
Prostatická kyselá fosfatáza – od biologie prostaty po forenzní detekci stop spermií
Prostatická kyselá fosfatáza patří do skupiny enzymů, jejichž význam daleko přesahuje jejich původní biologickou funkci. V lidském těle se jedná především o sekret prostaty a o jednu z charakteristických složek semenné tekutiny.
V minulosti se po mnoho let používala jako marker onemocnění prostaty, než se široce prosadil prostatický specifický antigen (PSA). V forenzní vědě si však prostatická kyselá fosfatáza zachovala odlišnou a pozoruhodně trvalou roli: již více než sedmdesát let se její aktivita využívá jako důležitý biochemický marker při předpokládané detekci stop, které mohou obsahovat sperma. Jeho užitečnost vyplývá z mimořádně vysoké enzymatické aktivity přítomné v prostatických sekretech, což znamená, že i relativně malé množství biologického materiálu může za vhodně navržených reakčních podmínek vyvolat snadno pozorovatelnou chemickou reakci.
Tato vlastnost se stala základem klasických forenzních testů na kyselou fosfatázu a představuje také biochemický princip, z něhož vychází test StripDetective. Prostatová kyselá fosfatáza je však podstatně zajímavější protein, než by se mohlo zdát na základě jejího použití jako jednoduchého analytického markeru. Jedná se o glykosylovaný enzym se složitou trojrozměrnou strukturou, který patří do rodiny histidinových kyselých fosfatáz, je schopen hydrolyzovat širokou škálu sloučenin obsahujících fosfát a jeho úplná fyziologická role v semenné tekutině dosud nebyla zcela objasněna. Porozumění jeho molekulární struktuře a enzymatickým vlastnostem pomáhá vysvětlit, proč je jeho aktivita již po desetiletí tak užitečná při prediktivním screeningu spermatu.
Od diagnostického enzymu k forenznímu markeru
Historie kyselé fosfatázy prostaty jako biologického markeru začala ještě před jejím širokým uplatněním v forenzní vědě. V první polovině dvacátého století vědcizjistili, že aktivita tohoto enzymu je úzce spojena s prostatou a může se při určitých patologických stavech zvýšit. Prostatická kyselá fosfatáza se následně stala jedním z nejdůležitějších biochemických markerů používaných při diagnostice a sledování rakoviny prostaty, než byla její role do značné míry nahrazena testováním na PSA. Zároveň vědci zaznamenali mimořádně vysokou aktivitu tohoto enzymu v lidské semenné tekutině. Tato vlastnost rychle upoutala pozornost forenzních vědců, kteří hledali rychlé chemické metody schopné identifikovat skvrny od semene, které nebylo vždy možné rozpoznat pouhým okem.
V průběhu 40. let 20. století se v odborné literatuře začalo objevovat popsání využití aktivity kyselé fosfatázy k identifikaci skvrn od semene. V roce 1949 Sidney Kaye publikoval článek s názvem „Test kyselé fosfatázy pro identifikaci skvrn od semene“. V následujícím desetiletí se tato metoda natolik etablovala, že vědci vyvinuli stabilní reagenční papíry, které umožňovaly provádět testy kyselé fosfatázy i mimo běžné laboratorní prostředí. Forenzní věda se od té doby dramaticky změnila: jsou k dispozici imunologické testy, pokročilá mikroskopie, profilování DNA a široká škála molekulárních metod. Testování kyselé fosfatázy si nicméně zachovalo svou hodnotu jako rychlá metoda předběžného screeningu, protože je založeno na skutečné a vysoce charakteristické biochemické vlastnosti semenné tekutiny.
Co přesně je prostatická kyselá fosfatáza?
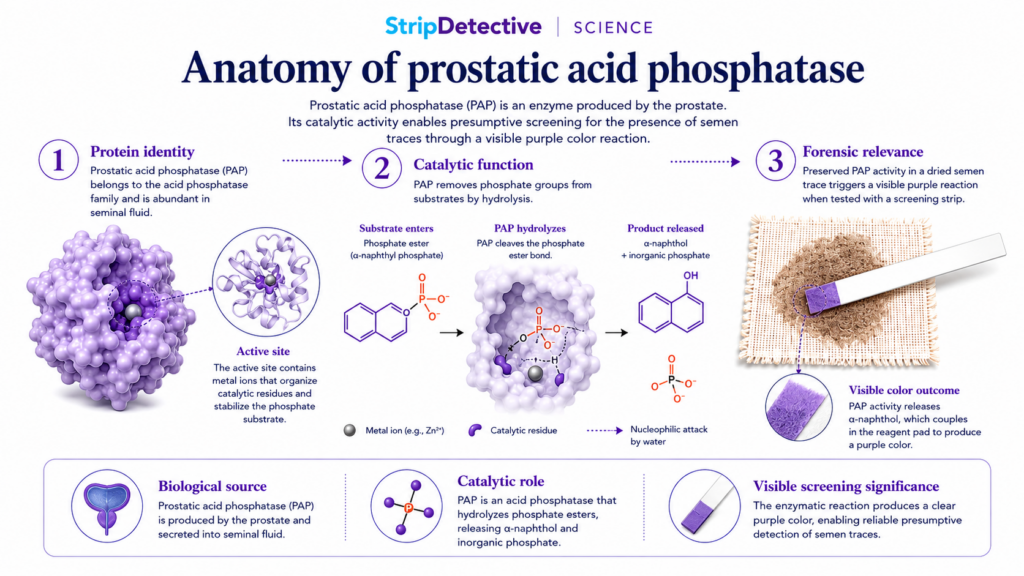
Prostatická kyselá fosfatáza, nejčastěji zkracovaná jako PAP (z anglického „Prostatic Acid Phosphatase“), je enzym patřící do skupiny kyselých fosfatáz. Zkratka PAP se také často vyskytuje ve vědecké literatuře. Tento protein je kódován genem, který je v současnosti označován jako ACP3, ačkoli dřívější genový symbol ACPP zůstává ve starších publikacích stále velmi běžný. Gen se nachází na dlouhém rameni chromozomu 3, v oblasti 3q22.1, a kóduje prekurzorový protein sestávající z 386 aminokyselin. Prvních 32 aminokyselin tvoří signální peptid, který nasměruje nově syntetizovaný protein do sekreční dráhy. Po odstranění tohoto signálního peptidu se zralý protein skládá z 354 aminokyselin.
Pokud se molekulová hmotnost zralého polypeptidu vypočítá výhradně na základě jeho aminokyselinového řetězce, činí tato hodnota přibližně 41 kDa. Ve skutečnosti je však molekula PAP těžší, protože prochází glykosylací, což je posttranslační modifikace, při níž se k bílkovině připojují sacharidové struktury. Zralá glykosylovaná podjednotka má proto molekulovou hmotnost přibližně 48–50 kDa. Dvě takové podjednotky se spojují a tvoří nativní homodimer s celkovou molekulovou hmotností přibližně 100 kDa. To vysvětluje, proč vědecké publikace mohou PAP různě popisovat jako protein o molekulové hmotnosti přibližně 41, 50 nebo 100 kDa. Tyto hodnoty si neodporují: vztahují se postupně na zralý polypeptidový řetězec, glykosylovanou podjednotku a kompletní funkční dimer.
Trojrozměrná struktura enzymu
Prostatická kyselá fosfatáza má dobře charakterizovanou trojrozměrnou strukturu. Každá ze dvou podjednotek tvořících dimer se skládá ze dvou hlavních domén. Větší doména má architekturu α/β, přičemž centrální β-list je obklopen α-helikami, zatímco menší doména se skládá převážně z α-helikálních struktur. Štrbina mezi těmito doménami obsahuje aktivní místo enzymu, do kterého musí vstoupit substrát obsahující fosfát. Přesná geometrie této kapsy je pro katalýzu zásadní, protože zajišťuje správné umístění fosfátové skupiny substrátu ve vztahu ke klíčovým katalytickým aminokyselinovým zbytkům.
PAP je rovněž glykoprotein. Byla identifikována tři hlavní místa N-glykosylace, která se tradičně označují jako Asn62, Asn188 a Asn301, pokud se jako referenční bod pro číslování použije zralý protein. Pokud se však číslování aminokyselin začíná u kompletního prekurzoru, odpovídají stejné pozice Asn94, Asn220 a Asn333. Tento zdánlivě nepodstatný rozdíl je důležitý při čtení vědecké literatury, protože různí autoři mohou používat odlišné systémy číslování, i když popisují přesně stejné strukturní rysy. K stabilitě a strukturním vlastnostem enzymu přispívají sacharidové řetězce spolu s konzervovanými cysteinovými zbytky a disulfidovými vazbami, které pomáhají stabilizovat zralý protein.
PAP patří do rodiny histidinových kyselých fosfatáz
Prostatická kyselá fosfatáza patří do nadčeledi histidinových kyselých fosfatáz. Charakteristickým rysem této skupiny je vysoce konzervovaný aminokyselinový motiv RHGXRXP, který obsahuje histidinový zbytek přímo zapojený do katalýzy. V zralé lidské PAP je jedním z nejdůležitějších katalytických zbytků His12. Jeho role sahá daleko za pouhou pomoc při umístění substrátu v aktivním místě. Během katalýzy dochází k dočasnému přenosu fosfátové skupiny ze substrátu na tento histidin, čímž vzniká přechodný meziprodukt – fosfo-histidin.
Tento komplex fosfo-histidinu je následně hydrolyzován, čímž se uvolňuje anorganický fosfát a enzym se vrací do svého původního stavu, takže může začít další katalytický cyklus. Na organizaci aktivního místa se podílí několik dalších aminokyselinových zbytků, včetně Arg11, Arg15 a Arg79, jejichž kladně nabité postranní řetězce pomáhají stabilizovat záporně nabitou fosfátovou skupinu, spolu s His257 a Asp258. Asp258 se podílí na organizaci katalytického prostředí a mechanismu přenosu protonů, ačkoli přesný rozsah jeho role byl předmětem diskusí v mechanistických studiích. Reakce prováděná PAP je proto podstatně složitější než pouhé „odštěpení“ fosfátové skupiny. Zahrnuje přechodnou tvorbu kovalentního meziproduktu enzym–fosfát, což je jedna z charakteristických mechanistických vlastností rodiny histidinových kyselých fosfatáz.
Jeden enzym, mnoho možných substrátů
Prostatická kyselá fosfatáza není enzym, který rozpoznává pouze jednu sloučeninu. Vyznačuje se relativně širokou substrátovou specificitou a je schopna hydrolyzovat celou řadu fosfomonoesterů. V laboratorních studiích byly jako substráty PAP použity fenylfosfát, p-nitrofenylfosfát, fosfotyrosin, fosfocholin, AMP a několik fosforylovaných derivátů naftolu. Tato relativně široká specificita je důležitá jak pro pochopení fyziologických funkcí enzymu, tak pro vysvětlení toho, jak jej lze využít v analytické chemii.
Zvláštní pozornost si zaslouží α-naftylfosfát, substrát používaný také v reakčním systému StripDetective. Kinetické studie lidské kyselé fosfatázy prostaty prokázaly příznivé enzymatické vlastnosti této sloučeniny, včetně nízké hodnoty Km za zkoumaných podmínek, což naznačuje účinnou interakci mezi enzymem a substrátem. To by však nemělo být vykládáno jako důkaz, že α-naftylfosfát je přírodní sloučenina vyskytující se v semenné tekutině. Jedná se o syntetický analytický substrát záměrně zvolený proto, že při jeho enzymatické hydrolýze vzniká α-naftol, který se poté může účastnit druhé chemické reakce vedoucí k tvorbě silně zbarveného produktu.
Jakou funkci vlastně plní prostatická kyselá fosfatáza ve spermatu?
Úplná fyziologická funkce velmi velkého množství PAP přítomného v semenné tekutině dosud nebyla jednoznačně objasněna. To je poněkud překvapivé, protože tento enzym je znám již desítky let, jeho struktura byla důkladně charakterizována a jeho aktivitu lze relativně snadno měřit. Nejpravděpodobnějším vysvětlením je, že PAP neplní jednu izolovanou funkci, ale podílí se na několika různých metabolických procesech v semenné plazmě a v biochemickém prostředí obklopujícím spermie.
Jedním z nejlépe zdokumentovaných přirozeně se vyskytujících substrátů je kyselina lysofosfatidová (LPA). LPA je biologicky aktivní lipid, který se podílí na buněčné signalizaci. Studie lidské semenné plazmy prokázaly, že PAP dokáže odstranit fosfátovou skupinu z LPA, čímž vzniká monoacylglycerol. To naznačuje, že tento enzym může přispívat k regulaci koncentrace signálních lipidů v semenné tekutině a může tak ovlivňovat její lokální biochemické prostředí.
Dalším obzvláště zajímavým potenciálním fyziologickým substrátem je fosfocholin. PAP je schopen hydrolyzovat fosfocholin za vzniku cholinu a anorganického fosfátu. To je obzvláště zajímavé, protože ejakulát spojuje sekrece z několika různých žláz: semenné váčky přispívají sloučeninami obsahujícími fosfocholin, zatímco prostata přispívá velmi velkým množstvím PAP. Cholin vzniklý touto reakcí by se následně mohl podílet na procesech regulujících funkci spermií. Byl dokonce navržen model, v němž produkce cholinu zprostředkovaná PAP nepřímo přispívá k pohyblivosti spermií prostřednictvím cholinergních signálních mechanismů. Jedná se však spíše o zajímavou fyziologickou hypotézu než o definitivně prokázanou primární funkci PAP.
AMP, adenosin a další účinky PAP
Enzymatické schopnosti prostatické kyselé fosfatázy sahají ještě dále. PAP může fungovat jako 5′-nukleotidáza a katalyzovat hydrolýzu AMP na adenosin a anorganický fosfát. Tato aktivita byla obzvláště důkladně studována v souvislosti s transmembránovou formou PAP nacházející se v nervovém systému, kde se lokálně produkovaný adenosin může podílet na modulaci přenosu bolestivých signálů. Existuje však podstatně méně důkazů o tom, že produkce adenosinu představuje hlavní funkci velmi vysoké koncentrace PAP přítomné v semenné tekutině.
Tento enzym vykazuje aktivitu také vůči fosfotyrosinu a může se podílet na regulaci fosforylace bílkovin v buňkách prostaty. Tyto poznatky dokazují, že PAP by měl být považován spíše za biochemicky všestranný enzym než pouze za marker určité tělesné tekutiny. Různé formy tohoto proteinu mohou plnit různé funkce v závislosti na jejich buněčné lokalizaci, dostupnosti konkrétních substrátů a místním chemickém prostředí.
Sekreční a transmembránové formy PAP
Gen ACP3 může vést ke vzniku více než jedné formy tohoto proteinu. Pro forenzní detekci spermatu je nejdůležitější sekreční forma, obecně označovaná jako sPAP. Tato forma je produkována epiteliálními buňkami prostaty a uvolňována ve velkém množství do semenné tekutiny. Její mimořádně vysoká enzymatická aktivita tvoří základ klasických prezumptivních testů na kyselou fosfatázu.
Existuje také transmembránová forma, známá jako TM-PAP, která obsahuje další úsek, díky němuž je protein ukotven v buněčné membráně. Byl identifikován i mimo prostatu, mimo jiné v nervovém systému. PAP se také vyskytuje uvnitř buněk prostaty, kde se pravděpodobně podílí na regulaci fosforylace proteinů. Existence těchto různých forem ukazuje, že biologický význam ACP3 přesahuje pouhou sekreci enzymu do spermatu, ačkoli z forenzního hlediska zůstává nejrelevantnější právě sekreční forma.
Proč je kyselá fosfatáza tak užitečným forenzním markerem?
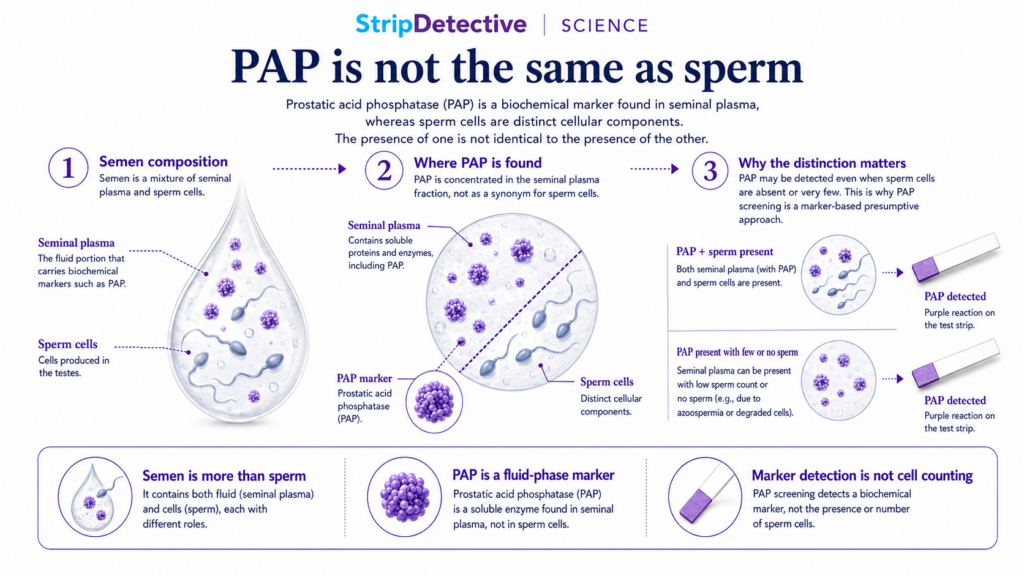
V forenzní vědě se užitečný marker nemusí nutně vyskytovat výlučně v jednom typu biologického materiálu. Kyselá fosfatáza není zcela specifická pro sperma, protože aktivitu fosfatázy lze detekovat i v jiných tkáních a tělních tekutinách. To, co činí semennou tekutinu charakteristickou, je míra enzymatické aktivity. Sperma obsahuje obzvláště vysoké hladiny aktivity kyselé fosfatázy, převážně prostatického původu, což umožňuje navrhnout chemický test s reakční prahovou hodnotou, při níž vysoká enzymatická aktivita vyvolá jasně viditelný signál, zatímco typické biologické pozadí zůstává podstatně slabší.
Toto je klasický princip, na kterém je založen prediktivní marker. Marker nemusí být absolutně jedinečný; musí se však v cílovém materiálu vyskytovat v takové míře, aby bylo možné jej smysluplně odlišit od normálního biologického pozadí. Z tohoto důvodu je testování kyselé fosfatázy považováno spíše za prediktivní screeningovou metodu než za definitivní potvrzovací test. Jeho účelem je naznačit, že vzorek obsahuje biochemický signál odpovídající materiálu, který může obsahovat sperma. V forenzní laboratorní praxi může takový screening pomoci identifikovat oblasti vyžadující další vyšetření, snížit počet vzorků odesílaných k komplexnější analýze a rychle lokalizovat potenciálně relevantní biologické stopy.
Od neviditelného enzymu k fialové barvě
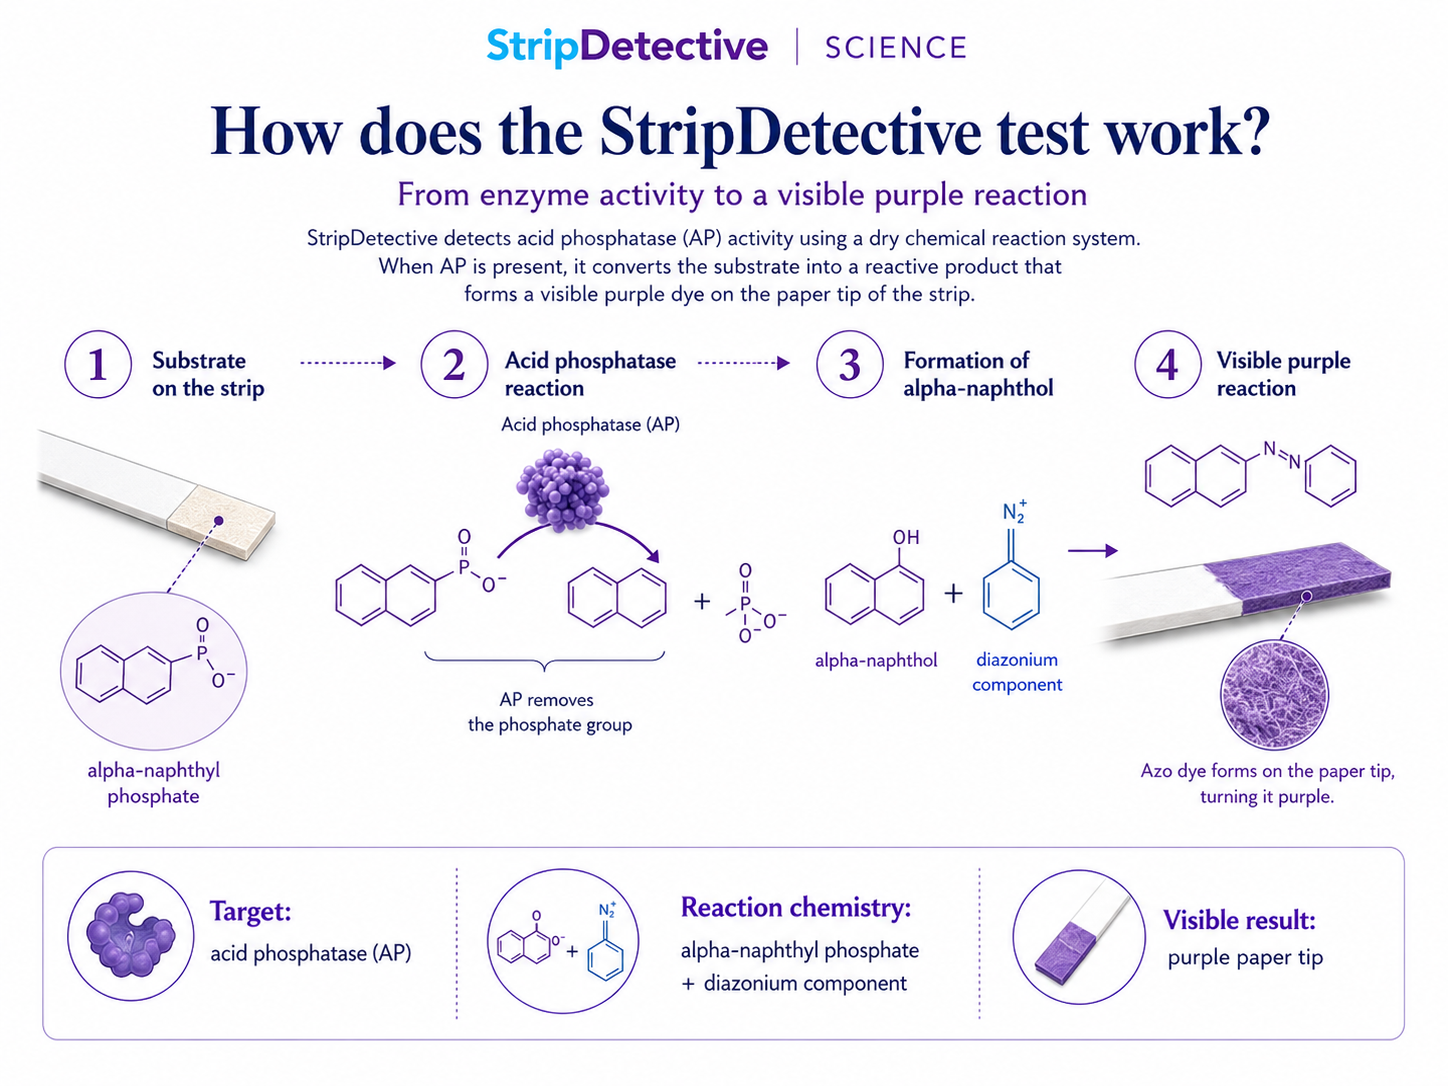
Test StripDetective využívá enzymatickou aktivitu kyselé fosfatázy, namísto přímého rozpoznání proteinu PAP pomocí protilátky. Test rovněž nedetekuje samotnou DNA ani spermie. Místo toho odhaluje schopnost enzymu provést specifickou chemickou reakci. První klíčovou složkou reakčního systému je α-naftylfosfát. Je-li ve vzorku přítomna dostatečně vysoká aktivita kyselé fosfatázy, enzym odstraní fosfátovou skupinu z tohoto substrátu, čímž vznikne α-naftol.
α-naftol se poté stává substrátem pro druhou fázi reakce. Reaguje s vhodnou diazoniovou solí v kopulační reakci, při které vzniká barevná azo-sloučenina. Právě tato sloučenina je zodpovědná za charakteristickou fialovou nebo purpurovou barvu, která se objeví na testovací ploše. Test tedy kombinuje dva procesy: enzymatickou reakci, po níž následuje chemická reakce vedoucí ke vzniku barvy. Díky této sekvenci se enzymatická aktivita, která by jinak byla pouhým okem neviditelná, přemění na signál, který lze vizuálně vyhodnotit bez použití specializovaných analytických přístrojů.
Proč je výběr α-naftylfosfátu důležitý?
Výběr substrátu pro enzymatický test není náhodný. Substrát by měl být enzymem účinně rozpoznán, měl by umožňovat dostatečně rychlou reakci, měl by vytvářet produkt, který lze snadno detekovat, a měl by zůstat dostatečně stabilní v konečném přípravku. α-naftylfosfát je v tomto ohledu obzvláště užitečný, protože s ním lidská prostatická kyselá fosfatáza příznivě interaguje, zatímco výsledný α-naftol je ideálně vhodný pro kopulační reakce s diazoniovými sloučeninami.
V praxi to umožňuje efektivní propojení jedné biochemické fáze s druhou chemickou fází. Enzymatická aktivita nejprve vytvoří α-naftol, který se následně přemění na intenzivně zbarvenou sloučeninu. Díky této kombinaci může enzym, který sám o sobě není bez speciálního vybavení viditelný, vyprodukovat snadno interpretovatelný viditelný signál.
Test se skládá z více než dvou reaktivních sloučenin
Na první pohled se celý systém může jevit jako jednoduchý: stačí zkombinovat vhodný substrát pro fosfatázu s diazoniovou sloučeninou a sledovat, zda se objeví zabarvení. V praxi je však vytvoření stabilního a reprodukovatelného enzymatického testu podstatně složitější. Aktivitu fosfatázy ovlivňuje pH, koncentrace činidel, vodní aktivita, teplota, stabilita substrátu a přítomnost jiných enzymů nebo chemických sloučenin, které mohou reakci narušovat. Každý z těchto faktorů může změnit rychlost vzniku zabarvení nebo zvýšit pozadí a nespecifické reakce.
Z tohoto důvodu obsahuje přípravek StripDetective více než jen α-naftylfosfát a diazoniové činidlo. Obsahuje také sloučeniny pufrující pH, které pomáhají udržovat reakční prostředí příznivé pro enzymatickou aktivitu; stabilizátory, které podporují účinnost činidel během skladování; a ochranné látky, které pomáhají chránit citlivé složky reakčního systému před degradací. Přípravek dále obsahuje látky urychlující reakci, jejichž účelem je podpořit rychlý a zřetelně viditelný barevný vývoj, a také inhibitory nespecifické fosfatázové aktivity, které mají za úkol omezit nežádoucí enzymatické reakce a zlepšit selektivitu celého systému.
Vypracování vhodných poměrů těchto složek, optimalizace reakčních podmínek a vytvoření vhodného stabilizačního systému si vyžádaly dva roky práce na složení testu StripDetective. Úkolem nebylo pouze prokázat reakci kyselé fosfatázy, protože základní chemické principy jsou známy již desítky let. Cílem bylo vytvořit systém, který zůstane stabilní během skladování, vyprodukuje jasně viditelný signál v krátkém definovaném časovém úseku a omezí vliv nespecifických reakcí za podmínek, které se značně liší od kontrolovaného prostředí forenzní laboratoře.
Proč se může intenzita barvy lišit?
Rychlost, s jakou se barva vyvíjí, a její konečná intenzita závisí částečně na enzymatické aktivitě přítomné v testovaném vzorku. Je-li aktivita kyselé fosfatázy vysoká, může být v krátkém časovém úseku přeměněn větší počet molekul substrátu na α-naftol, což vede k rychlejšímu a výraznější tvorbě zbarveného produktu. Při nižší enzymatické aktivitě může být reakce odpovídajícím způsobem slabší. Tento vztah vysvětluje, proč mohou různé vzorky vykazovat různý stupeň vybarvení.
Intenzitu barvy však nelze vykládat jako přesné kvantitativní měření množství přítomné semenné tekutiny. StripDetective je spíše kvalitativní než kvantitativní test a vizuální vzhled reakce je ovlivněn i jinými faktory než pouze původním množstvím přítomného enzymu. Na výslednou barvu mohou mít vliv množství odebraného materiálu, stupeň zředění vzorku, stáří a stav stopy, účinnost přenosu vzorku, povaha testovaného povrchu a způsob provedení postupu. Z tohoto důvodu by měl být výsledek vyhodnocován v rámci stanovené doby odečtu a porovnáním s příslušnou referenční stupnicí, a nikoli jako odhad množství semenného materiálu.
Proč je pozitivní výsledek stále považován za předběžný?
Nejdůležitějším principem při zodpovědné interpretaci tohoto testu je uznání skutečnosti, že kyselá fosfatáza se nevyskytuje výlučně v semeni. Aktivitu fosfatázy lze detekovat i v jiných tkáních a biologických materiálech, i když obvykle v podstatně nižších koncentracích. Pozitivní chemická reakce tedy naznačuje, že byla detekována enzymatická aktivita přesahující stanovenou prahovou hodnotu; neznamená to však přímou identifikaci molekuly vyskytující se výlučně v semenné tekutině. Z tohoto důvodu jsou testy na kyselou fosfatázu klasifikovány jako presumpční testy.
Předběžný pozitivní výsledek naznačuje, že zkoumaná stopa může obsahovat sperma a může být důvodem k dalšímu vyšetření, avšak sám o sobě nepředstavuje definitivní potvrzení. Je-li vyžadována jednoznačná identifikace, měl by být materiál vyšetřen pomocí vhodných laboratorních metod. Pokud je cílem navíc určit osobu, od níž biologický materiál pochází, je nutná analýza DNA. Jedná se o různé úrovně informací, které odpovídají na různé vědecké otázky, a neměly by být považovány za zaměnitelné.
Co znamená negativní výsledek?
I negativní výsledek je třeba správně interpretovat. Znamená to, že v odebraném a vyšetřeném vzorku nebyla zjištěna aktivita kyselé fosfatázy přesahující reakční práh testu. Neměl by však být vykládán jako absolutní biologický důkaz toho, že na testovaném místě nikdy nebylo přítomno sperma, protože schopnost detekovat enzymatickou aktivitu závisí na mnoha faktorech souvisejících se samotným vzorkem a způsobem jeho odběru.
Reakci může oslabit velmi malé množství biologického materiálu, značné zředění, enzymatický rozklad, neefektivní přenos vzorku, nerovnoměrné rozložení stopové látky nebo přítomnost látek narušujících enzymatickou aktivitu. To je další důvod, proč forenzní věda jasně rozlišuje mezi screeningovými a potvrzujícími vyšetřeními. Předběžný test pomáhá při rozhodování o další analýze, nemůže však nahradit všechny následující fáze laboratorního vyšetření.
Od biologie jednoho proteinu k analytickému nástroji
Prostatická kyselá fosfatáza je vynikajícím příkladem toho, jak lze znalosti o struktuře a funkci jediného proteinu promítnout do praktického analytického systému. Známe umístění genu, který ji kóduje, její aminokyselinovou sekvenci, architekturu její dimerní struktury, místa glykosylace i uspořádání jejího aktivního centra. Víme, že patří do rodiny histidinových kyselých fosfatáz a že při katalýze dochází k přechodnému vzniku meziproduktu ve formě fosfohistidinu. Víme také, že tento enzym může působit na širokou škálu substrátů a že se může podílet na několika různých metabolických procesech v semenné tekutině.
Zároveň však zůstávají nezodpovězeny důležité otázky týkající se její fyziologické role. PAP se s největší pravděpodobností podílí současně na metabolismu sloučenin, jako jsou fosfocholin, LPA a AMP, a může tak ovlivňovat biochemické prostředí semenné plazmy a potenciálně i funkci spermií. Z forenzního hlediska však zůstává jedna vlastnost zásadní: semenná tekutina vykazuje ve srovnání s většinou ostatních biologických materiálů mimořádně vysokou aktivitu kyselé fosfatázy. Právě tento rozdíl činí tento enzym cenným jako předpokládaný biochemický marker.
StripDetective využívá právě tento základní biochemický princip. Aktivita kyselé fosfatázy vede k hydrolýze pečlivě vybraného substrátu, při čemž vzniká α-naftol, který se následně podílí na reakci vedoucí k tvorbě viditelného produktu fialové barvy. Celý systém ilustruje jeden ze základních principů biochemické analýzy: není vždy nutné detekovat molekulu přímo, pokud lze charakteristickou reakci katalyzovanou touto molekulou pozorovat s dostatečnou citlivostí a zřetelností. To je vědecký princip, na kterém je založen test StripDetective.
Literatura
Kaye S. Test kyselé fosfatázy pro identifikaci skvrn od semene. Journal of Laboratory and Clinical Medicine.
1949;34(5):728–732. PMID: 18127788.
Kind SS. Stabilní testovací papírky pro stanovení kyselé fosfatázy v semeni. Nature. 1958;182:1372–1373. doi:10.1038/1821372b0.
Lin MF, Lee CL, Wojcieszyn JW, Wang MC, Valenzuela LA, Murphy GP, Chu TM. Základní biochemické a imunologické aspekty kyselé fosfatázy prostaty. The Prostate. 1980;1(4):415–425. doi:10.1002/pros.2990010405.
Vihko P, Virkkunen P, Henttu P, Roiko K, Solin T, Huhtala ML. Molekulární klonování a analýza sekvence cDNA kódující lidskou kyselou fosfatázu prostaty. FEBS Letters. 1988;236(2):275–281. doi:10.1016/0014-5793(88)80037-1.
Jakob CG, Lewinski K, Kuciel R, Ostrowski W, Lebioda L. Krystalová struktura lidské kyselé fosfatázy prostaty. The Prostate. 2000;42(3):211–218. doi:10.1002/(SICI)1097-0045(20000215)42:3<211::AID-PROS7>3.0.CO;2-U.
Ortlund E, LaCount MW, Lebioda L. Krystalové struktury lidské prostatické kyselé fosfatázy v komplexu s fosfátovým iontem a kyselinou α-benzylaminobenzylfosfonovou aktualizují mechanistický obraz a nabízejí nové poznatky pro návrh inhibitorů.
Biochemistry. 2003;42(2):383–389. doi:10.1021/bi0265067.
Sharma S, Rauk A, Juffer AH. Studie založená na metodě DFT týkající se tvorby meziproduktu fosfo-histidinu v kyselé fosfatáze prostaty.
Journal of the American Chemical Society. 2008;130(30):9708–9716. doi:10.1021/ja710047a.
Muniyan S, Chaturvedi NK, Dwyer JG, LaGrange CA, Chaney WG, Lin MF. Lidská prostatická kyselá fosfatáza: struktura, funkce a regulace. International Journal of Molecular Sciences. 2013;14(5):10438–10464. doi:10.3390/ijms140510438.
Liu X, Yu L, Xia Z, Li J, Meng W, Min L, Li F, Wang X. Čištění, identifikace a struktura prostatické kyselé fosfatázy v lidském spermatu stanovená pomocí kryoelektronové mikroskopie. Biochemical and Biophysical Research Communications. 2024;702:149652. doi:10.1016/j.bbrc.2024.149652.
Luchter-Wasylewska E. Kooperativní kinetika lidské kyselé fosfatázy prostaty. Biochimica et Biophysica Acta. 2001;1548(2):257–264. doi:10.1016/S0167-4838(01)00239-4.
Bowers JL, Bowers GN Jr. 1-naftylfosfát: specifikace vysoce kvalitního substrátu pro měření aktivity kyselé fosfatázy prostaty. Clinical Chemistry. 1982;28(1):212–215. doi:10.1093/clinchem/28.1.212.
Tanaka M, Kishi Y, Takanezawa Y, Kakehi Y, Aoki J, Arai H. Prostatická kyselá fosfatáza odbourává kyselinu lysofosfatidovou v semenné plazmě. FEBS Letters. 2004;571(1–3):197–204. doi:10.1016/j.febslet.2004.06.083.
Zylka MJ, Sowa NA, Taylor-Blake B, a kol. Kyselá fosfatáza prostaty je ektonukleotidáza a potlačuje bolest tvorbou adenosinu. Neuron. 2008;60(1):111–122. doi:10.1016/j.neuron.2008.08.024.
Hanley PJ. Nejasná fyziologická role prostatické kyselé fosfatázy (PAP): tvorba cholinu pro pohyblivost spermií prostřednictvím auto- a parakrinní cholinergní signalizace. Frontiers in Physiology. 2023;14:1327769. doi:10.3389/fphys.2023.1327769.
Národní centrum pro biotechnologické informace. ACP3 – kyselá fosfatáza 3 [Homo sapiens]. NCBI Gene, ID genu: 55. Aktuální cytogenetická lokalizace: 3q22.1.